塔斯马尼亚巨海蜘蛛Colossendeis tasmanica的生物发光现象。(A) 弱光环境下活体个体照片(索尼 a7SII,感光度 1000,光圈 f1.4,曝光 1/8 秒)。(B) 黑暗环境下腿部发出深蓝色生物光(索尼 a7SII,感光度 40000,光圈 f1.4,曝光 2.5 秒)。图片来源:《深海研究第一辑:海洋学研究论文》(2026) 在澳大利亚东海岸海面之下数千米、阳光完全无法抵达的幽暗深海,上演着一场绚丽的光影秀。造就这一奇观的,是两种会散发蓝色微光的长腿生物。
2017 年一次深海海洋考察期间,科学家观测到塔斯马尼亚巨海蜘蛛(Colossendeis tasmanica)与小巨海蜘蛛(Colossendeis minor)存在生物发光现象。这也是这两个物种的该现象首次得到正式记录与影像拍摄。
过去已有数起关于海蜘蛛发光的报道,例如 19 世纪晚期,有科研人员观测到印度洋采集的标本腹侧会透出蓝光。但当时无法判断,这些海蜘蛛是自身合成光源,还是接触深海珊瑚等生物,沾染上了其他生物的发光黏液。虽然大量深海生物都能够自主发光,但学界对海蜘蛛的生物发光机制知之甚少。
最新的相关研究成果详细刊载于近日的《深海研究第一辑》期刊论文。
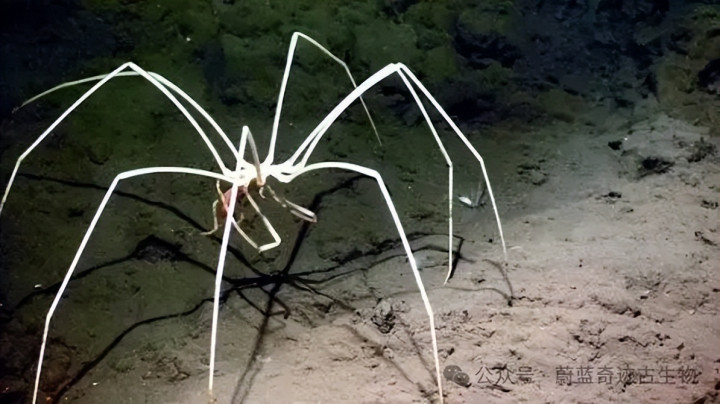
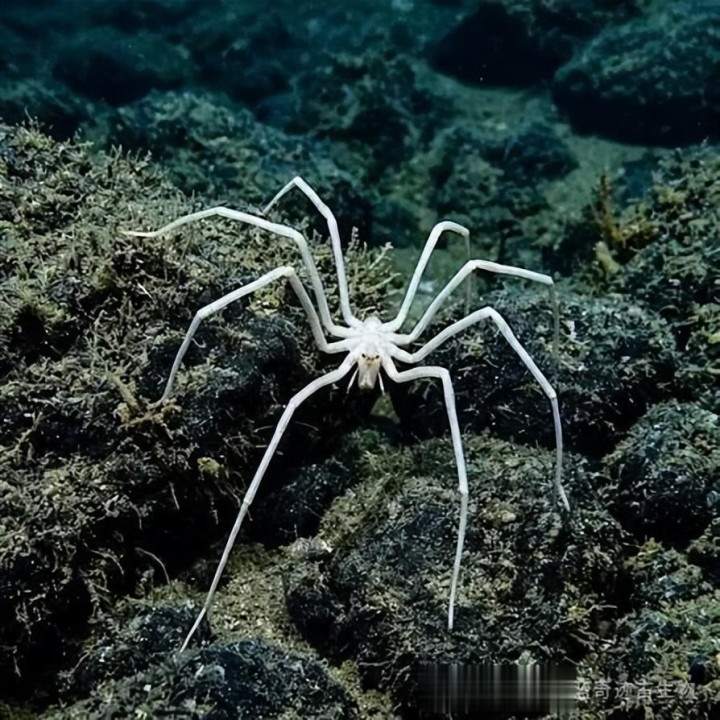
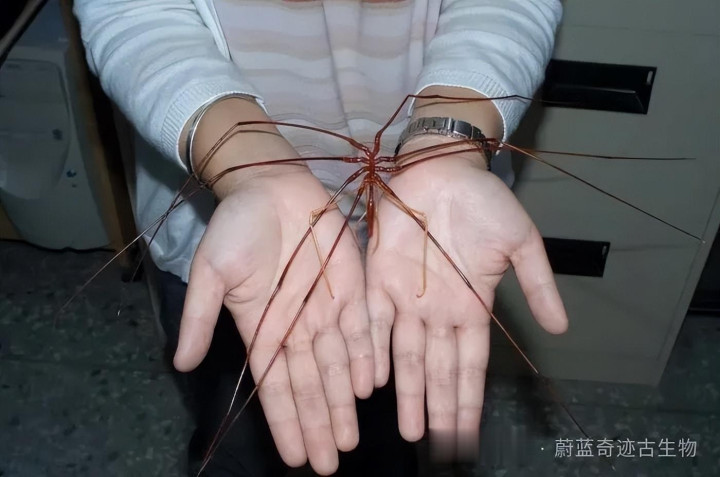
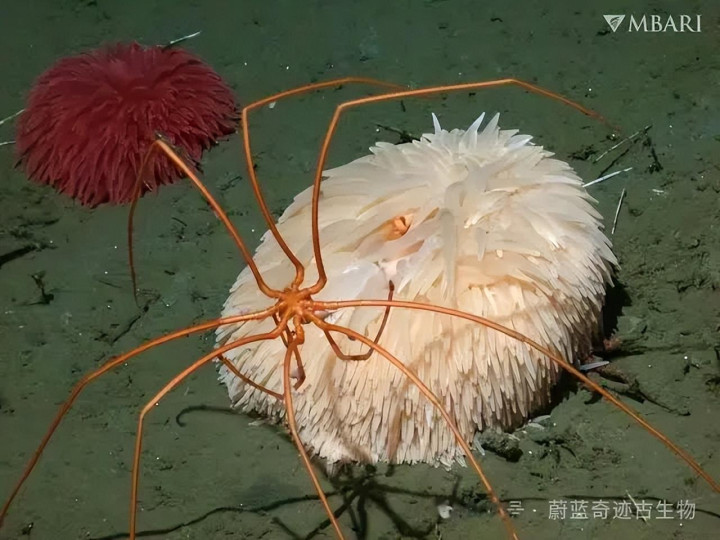
海蜘蛛纲的化石记录可追溯至志留纪,距今约 4.25 亿年;而来自上奥陶统的标本甚至将该类群的起源推至约 4.5 亿年前。海蜘蛛归属于螯肢亚门,该类群还包含蝎子、鲎、蜘蛛等动物。研究该类群任何生物学特征,总会遇到特例。多数海蜘蛛具备 8 条步足,部分深海、极地物种拥有 10 条或 12 条步足。潮间带种类步足跨幅多为 3‑60 mm,深海标本体型更大,步足跨幅常达 20‑50 cm,更大个体也时有记录。史密森尼美国国家自然历史博物馆一件标本步足跨幅可达 76 cm。眼(单眼)生长在形态大小各不相同的眼瘤之上;可具备 1、2 或 4 对眼,但正如该类群充满各种特例,深海类群中也存在完全失明的物种。
海蜘蛛演化上取得成功,部分得益于形态多样性与特殊生理特征。多样性最直观的体现是向前伸出的吻部,吻末端口器结构多样;头胸部还附着三对前附肢:螯肢、触须、抱卵足,其有无、发育程度各不相同。吻部、口器形态,配合三对附肢,是科、属级重要分类特征。丰富的形态使海蜘蛛可以适应多种多样的底质环境。身体末端为肛突,传统分类学称其为腹部。抱卵足为海蜘蛛特有结构,生于头胸部腹面或者颈部,位于第一对躯干侧突前方,为多节可抓握附肢。发育完全时,雌雄个体均可使用抱卵足清理身体;雄性专门利用抱卵足携带雌性排出的卵。很多物种会将卵产在别处,营寄生生活。当抱卵足缺失或者退化到无法携卵时,卵会直接粘附在雄性的腹面。
海蜘蛛行动迟缓,看上去扩散能力有限;但观察发现,它们可以划水悬浮于水体,依靠洋流完成远距离扩散。简单的身体构造对应着特化的呼吸与消化系统。呼吸依靠体表角质层直接从海水中摄取氧气。消化道盲囊从每一节躯干延伸进入对应的步足与螯肢(如果存在);消化道蠕动主要驱动消化道内含物与血淋巴循环。消化过程发生在细胞内部,依靠中肠上皮细胞胞饮作用完成。血淋巴循环依靠管状心脏(存在的物种),同时也依靠中肠以及消化道盲囊的蠕动。至少两种海蜘蛛没有心脏,完全依靠消化道剧烈蠕动完成循环。神经系统结构多变,和外部形态相关。大体上,脑位于眼瘤腹侧,视神经伸入眼瘤,其他神经支配吻、螯肢、触须、抱卵足;一串分节神经节向后延伸支配各对步足。想要完整了解该类群多变的神经系统,可参考相关详尽分析文献。
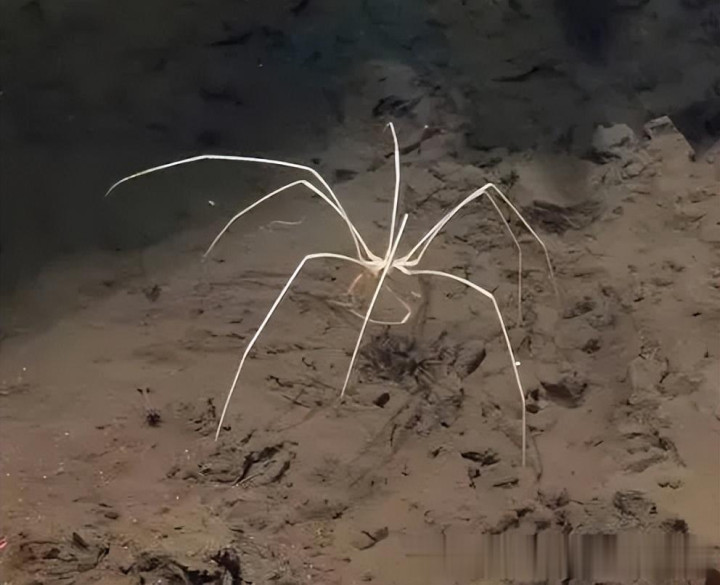
海蜘蛛全球广布,从潮间带直至深海深渊。目前已描述现生种约 1400 种,随着底栖采样工作推进,物种数量还在持续增加。
生物发光是深海底栖生物十分重要的生命现象,预估有 50‑60% 的深海物种可以发光。生物发光指活体生物释放冷可见光,依靠生化放能反应实现,分为荧光素‑荧光素酶系统和光蛋白系统两类。前者中,游离底物荧光素被荧光素酶氧化,释放光子;荧光素酶的总量改变反应动力学,但不会改变发光强度。后者则是荧光素与酶稳定结合在同一个蛋白分子内,在离子等辅因子激活下发光;总发光量和光蛋白的含量直接相关。
不少节肢动物类群的生物发光已有充分研究,但海蜘蛛发光的记录十分稀少。巨海蜘蛛属是唯一有发光报道的海蜘蛛类群,在海洋发光生物名录中仅有零散记载。现有资料有限,我们尚不清楚海蜘蛛当中发光现象的普遍程度。最早记录来自伍德‑梅森与阿尔科克,描述一件采集于印度洋的巨形巨海蜘蛛 Colossendeis colossea标本,其身体与步足腹面呈现 “明亮蓝绿色金属光泽”。阿尔科克后续记述:“该生物仰躺时如同星辰一般熠熠生辉,所有步足腹面都散发奇异的蓝色辉光”。早期观测明确发光仅局限于躯体和步足腹面,这就存在一种可能性:发光物质是从别的生物身上沾染而来。例如大量深海刺胞动物具备发光能力;本研究作者之一通过遥控水下机器人观测到,一只巴锡海蜘蛛趴在黑珊瑚表面,就有可能沾染上黏液形式的发光物质。
海蜘蛛不具备乌贼、鱼类那样特化的发光器,这提示海蜘蛛发光并非局限于专门器官,而是来自内部组织的弥散化学反应。金引用贾维斯与艾萨克的私人通信,记录实验室条件下优美裸海蜘蛛 Nymphon gracile第一对步足末端存在 “磷光”,但该报道没有得到验证,仅为轶事记录。海蜘蛛发光的功能尚不明确,金推测可用于求偶、驱避捕食者、种内或种间信号交流。赫林在实验室测定海洋发光生物光谱,记录某巨海蜘蛛(标注为 “C. gigantea?”)在过氧化氢刺激下步足发出蓝绿色光;C. gigantea并不是有效学名,极有可能是长吻巨海蜘蛛 Colossendeis proboscidea的同物异名。赫林测得该物种最大发射波长 485 nm,半带宽 84 nm,测定温度 18‑25 ℃,该波段是绝大多数海洋动物视色素敏感的光谱。
深海海蜘蛛活体样本获取难度高,造成相关发光研究资料匮乏。澳大利亚联邦科学与工业研究组织海洋国家平台、NESP 海洋生物多样性中心支持的 “深渊采样” 科考航次(调查船 Investigator 号,由奥哈拉博士带队),为研究澳大利亚东岸深海海蜘蛛提供独一无二的机会。本研究在船上对两种巨海蜘蛛属物种开展刺激实验,记录生物发光,并且获得海蜘蛛发光的首批实拍照片。依托数量充足的塔斯马尼亚巨海蜘蛛,我们对发光模式、生化、生理特征开展详细实验,首次揭示深海海蜘蛛的发光机制。
深渊之中的奇异微光考察过程中,研究人员采集了多种深海生物,其中包含 7 只塔斯马尼亚巨海蜘蛛、2 只小巨海蜘蛛,采集深度介于 1006 米(3301 英尺)至 4977 米(16329 英尺)。
为验证海蜘蛛是否可以自主发光,来自比利时鲁汶大学的热罗姆・马勒费博士带领的团队,先在科考船上开展系列分析。
研究人员将海蜘蛛放置在暗室中,通过轻微捏压刺激或者化学试剂诱导,海蜘蛛的腿部便会开始发光。科研团队随即对发光进行拍摄,测量发光强度、光谱,并测试腿部不同节段的发光反应。
塔斯马尼亚巨海蜘蛛仅腿部可以发出波长 449 纳米的深蓝色光;足部跗节尖端亮度最高,光芒向躯体方向逐渐衰减。化学诱导产生的发光可持续 5‑10 分钟;人工捏压触发的光则更微弱,持续时间从数秒至 2 分钟以上不等。
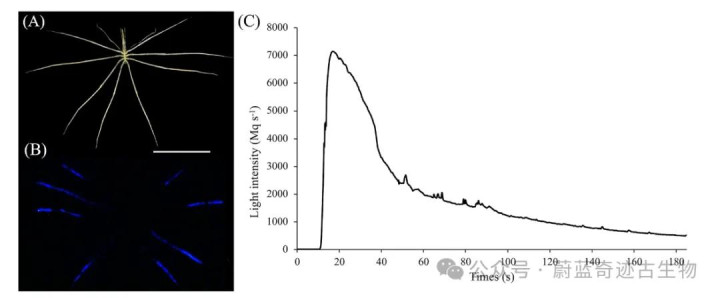
图 2 小巨海蜘蛛 Colossendeis minor 的生物发光 (A) 弱光下活体整体形态(索尼 a7SII,ISO 1250,f/2.0,曝光 1/25 s);(B) 生物发光图像(索尼 a7SII,ISO 102400,f/1.4,曝光 6 s);(C) 200 mM 氯化钾刺激后的典型发光强度‑时间曲线。比例尺 5 cm。 海蜘蛛因何发光?但当时研究团队还不清楚产生荧光的确切化学反应,也无法确定腿部内部承担发光功能的具体细胞。这些谜题只能等待回到陆地实验室再开展研究:科研人员对冷冻的腿部组织提取物进行生化检测,同时在显微镜下观察组织薄片。
显微分析表明,光源产生于腿部内部与消化道相关的细胞。这暗示海蜘蛛发光所需的关键物质,有可能来自它的食物。
针对常见生物发光通路的标准化学测试,几乎没有激发出光亮。后续补充实验发现:过氧化氢可以触发组织发光,并且钙浓度升高,发光反应随之增强。该特征和水母体内的光蛋白系统存在相似之处。
每一年的深渊科考都会报道大量新的深海无脊椎动物,其中越来越多物种被证实具备生物发光能力。本研究证实两种深渊海蜘蛛 —— 塔斯马尼亚巨海蜘蛛、小巨海蜘蛛可以自主发光,至此已知能够发光的海蜘蛛一共 4 种;另外两种为巨形巨海蜘蛛 Colossendeis gigantea(疑同物异名C. proboscidea)以及优美裸海蜘蛛 Nymphon gracile。本研究另外测试的巨海蜘蛛未定种、裸海蜘蛛未定种,没有观测到发光,还需要进一步研究。本文提供塔斯马尼亚巨海蜘蛛、小巨海蜘蛛活体图像以及步足发光的发光仪原始记录。
早期文献记录C. gigas(即巨形巨海蜘蛛)发光出现在躯体、步足腹面;而本研究的两个物种发光只来自步足,并且不局限于腹侧。塔斯马尼亚巨海蜘蛛步足存在明显发光梯度,由基节向跗节亮度递增。塔斯马尼亚巨海蜘蛛发光峰值 449 nm 深蓝色光谱,和前人记录的未确定巨海蜘蛛 485 nm 蓝绿色光谱存在差异。该差异有可能属于物种特异性,也和测定温度相关:前人实验温度 18‑25 ℃,本实验测定温度 6 ℃。蓝‑深蓝、蓝绿发光在大洋、深海生物中最为普遍,占已测光谱的 79%。
经典冷热灭活法是鉴定荧光素‑荧光素酶发光系统的经典手段。本实验冷热混合组几乎测不到发光,信号接近仪器基线,说明塔斯马尼亚巨海蜘蛛不依靠经典荧光素‑荧光素酶体系。当然,冻干保存样本带来的方法学局限不能完全排除;但是同样冻干处理的样本,芬顿、过氧化氢酶实验依然有显著发光,证明样本内部发光活性物质并未完全失活。
过氧化氢、过氧化氢酶、芬顿试剂都可以诱发该海蜘蛛发光,并且反应强度依赖钙离子浓度;全部特征和已知的光蛋白系统高度吻合,提示活性氧参与发光通路。过氧化氢酶诱导发光强度和组织提取液的用量成正比,这也符合光蛋白系统特征。光蛋白最早发现于水母维特里亚多管水母 Aequorea vitrina,即水母素,钙离子激活即可发光,不需要氧气参与;发光总量和光蛋白含量成正比。多鳞蠕虫的光蛋白多鳞蠕虫素,也是冷热灭活实验无发光,芬顿试剂(过氧化氢 + 亚铁离子)可以激活。其他光蛋白系统还见于蛇尾加州蛇尾 Ophiopsila californica(蛇尾素)、双壳类凿船贝 Pholas dactylus(凿船贝素)、头足类发光真鱿 Eucleoteuthis luminosa(合光素),均可被过氧化物或其他氧化剂触发。
过往针对合光素、凿船贝素的研究,同样提到过氧化氢酶‑过氧化氢、过氧化物酶‑过氧化氢在光蛋白介导发光中的作用。本实验芬顿反应发光强度随钙离子提升 23 倍(乙二醇双 (2‑氨基乙醚)‑四乙酸螯合组对比 1 M 氯化钙组)。高浓度氯离子会通过清除羟基自由基、络合铁离子抑制芬顿氧化体系;氯化钙解离会释放大量氯离子,理论上应当抑制芬顿反应,本实验却观察到发光增强,直接证明钙离子本身参与发光生成。钙离子激活光蛋白在大量刺胞动物、栉水母中都有报道。
但是,研究还没有鉴定塔斯马尼亚巨海蜘蛛光蛋白内部的发色团。绝大多数光蛋白以腔肠素或者其衍生物作为底物。水母素、 Mnemiopsin 使用腔肠素;合光素使用脱氢腔肠素。生化证据提示塔斯马尼亚巨海蜘蛛体内存在一类对活性氧、钙离子敏感的光蛋白,还需要分子层面实验验证与解析该推定光蛋白。
过氧化物酶染色阳性细胞定位于步足消化道盲囊内部,和实际发光位置匹配。过氧化物酶在细胞内具备多种生理功能;氯化钾刺激发光之后染色信号消失,该现象十分值得关注。该现象可以用 “单次周转光蛋白体系被消耗殆尽” 的假说解释,但这还只是推测,有待实验进一步验证。
还需要更多生化实验完整解析塔斯马尼亚巨海蜘蛛光发生的全部步骤。从发光反应对活性氧敏感这一点推测,过氧化物酶阳性细胞是该物种发光生化反应的关键部位。发光细胞位于消化道盲囊,提示发光必需物质有可能通过摄食获取;类似现象见于多管水母、阳遂足。塔斯马尼亚巨海蜘蛛食性尚不明确;其他巨海蜘蛛属捕食底栖、浮游无脊椎动物,包括刺胞动物、软体动物、栉水母,不少猎物本身就具备生物发光能力,例如Beroe属栉水母,同样依靠光蛋白系统。鱼类拟肩光鱼 Parapriacanthus ransonneti也被证实可以从发光介形类猎物获取荧光素酶。
氯化钾去极化可以诱发发光,提示存在可去极化的兴奋细胞,说明发光有可能受神经调控。但是肾上腺素处理无法产生显著闪光,信号强度仅为人工海水机械刺激对照组的 1%,推测肾上腺素注射带来微弱机械扰动才产生这点信号。作为节肢动物,后续研究可以测试磷虾、十足目当中调控发光的其他神经效应分子,例如乙酰胆碱、血清素。本研究药理学实验重复样本有限,统计推论与普适性受到制约。未来深渊科考或者遥控机器人采样,应当重点关注这类迷人的海蜘蛛,采集更多个体,解答本研究提出的大量科学疑问。
科学家在论文中写道:“还需要更多研究,在分子层面验证并解析这套推测存在的光蛋白。”
研究人员表示,本次研究解开了部分谜题,但依旧留有诸多未知,首要问题便是海蜘蛛演化出发光能力的目的。“海蜘蛛(海蛛纲)生物发光的确切生态学功能至今尚不明确,值得进一步深入探究。”
熊猫配资提示:文章来自网络,不代表本站观点。